
恶性疟原虫裂殖体空间蛋白质组:揭秘细胞器组成与进化轨迹
The spatial proteome of the Plasmodium falciparum schizont illuminates the composition and evolutionary trajectories of its organelles
本文利用 hyperLOPIT 空间蛋白质组学技术,构建了恶性疟原虫(Plasmodium falciparum)裂殖体阶段的高分辨率亚细胞图谱。研究成功解析了 24 个不同的细胞生态位,并将 1646 个蛋白质精准定位,揭示了寄生虫细胞器在进化过程中的轨迹与适应性特征。
TL;DR
科学家通过 hyperLOPIT 空间蛋白质组学技术,首次为疟疾致病元凶——恶性疟原虫(Plasmodium falciparum)绘制了一份极其详尽的“细胞地图”。研究不仅定位了 1646 个蛋白质及其所属的 24 个细胞亚结构,还揭示了疟原虫如何通过重点改造与宿主接触的交互界面来实现进化突破。
背景定位
疟原虫是一种非常特殊的单细胞真核生物。它不仅仅是一个简单的寄生虫,更是一个复杂的“精装修大师”。在感染人类红细胞后,它会构建一系列特有的细胞器(如 Rhoptries, Micronemes)和跨越宿主细胞的转运通道(如 Maurer's clefts)。然而,长期以来,疟原虫约 1/3 的基因组就像是“黑箱”,我们既不知道它们在哪里,也不知道它们干什么。本文通过高分辨率空间蛋白质组学,一举打破了这一僵局,为疟疾生物学研究从“单一蛋白”跨越到“系统图谱”提供了重要基准。
痛点深挖:为什么疟原虫的定位这么难?
疟原虫的细胞结构具有高度的动态性和特异性:
- 分泌路径复杂:很多蛋白(如顶端复合物蛋白)在裂殖体成熟期可能同时存在于合成器官、转运小泡和最终的目的地。
- 宿主干扰:寄生虫位于红细胞内,且会向红细胞膜导出蛋白,传统的细胞破碎方法极易丢失这些“跨界”分布的信号。
- 核心复合物不稳:例如内膜复合物(IMC)通过极其纤细的细胞骨架支撑,常规手段难以将其作为一个完整的生化单元分离。
核心方法论:hyperLOPIT 的生化直觉
作者并没有依赖某种物理上的“精准切割”,而是利用了蛋白质共定位的相关性原理。
- 密度梯度离心:通过氮空化技术在保留细胞器完整性的前提下破碎细胞,利用碘克沙醇(Iodixanol)梯度让不同密度的细胞器分布在不同层级。
- 分布指纹图谱:同一细胞器的蛋白会表现出相同的丰度分布曲线。
- 机器学习辅助分类:通过 SVM 算法,将那些指纹图谱与“已知标记蛋白”高度相似的未知蛋白归入对应的 24 个“空间生态位”。
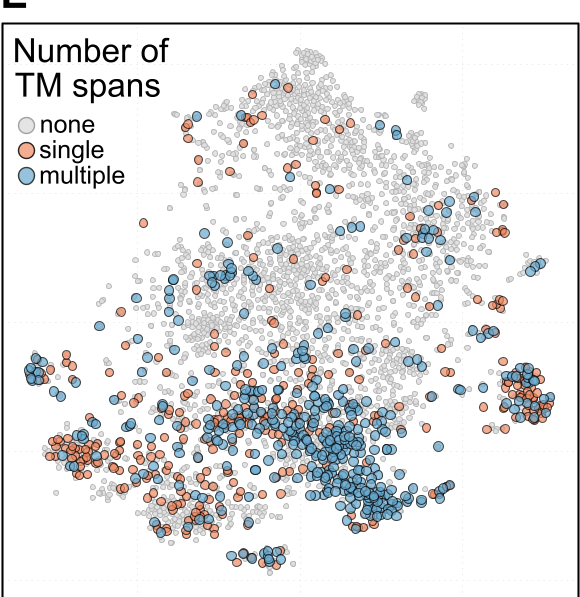 上图展示了 hyperLOPIT 的工作机理,从细胞裂解到 TMT 标记,最终通过 t-SNE 降维实现空间聚类。
实验战绩与深度洞察
研究不仅验证了经典的 Apicoplast(类质体) 和 Mitochondrion(线粒体),还清晰地解析了与宿主交互最为密切的 Maurer's clefts 和 PVM(寄生泡膜)。
1. 进化的“亚细胞编排”
通过比较基因组学,作者发现了一个有趣的现象:疟原虫在漫长的进化中,那些“最新发明”的基因(如 P. falciparum 特有的基因)主要投射到了细胞的最外层——宿主红细胞膜和交互界面。相比之下,核心代谢功能区则更加保守。
2. 生存压力下的突变图谱
通过分析 20,000 多个临床样本的突变数据,图谱显示,位于微线体(Micronemes)和棒状体(Rhoptries)以及导出蛋白区域的 pN/pS 比值(非同义突变/同义突变)极高。这意味着这些区域正处于与人类免疫系统的激烈“军备竞赛”中。
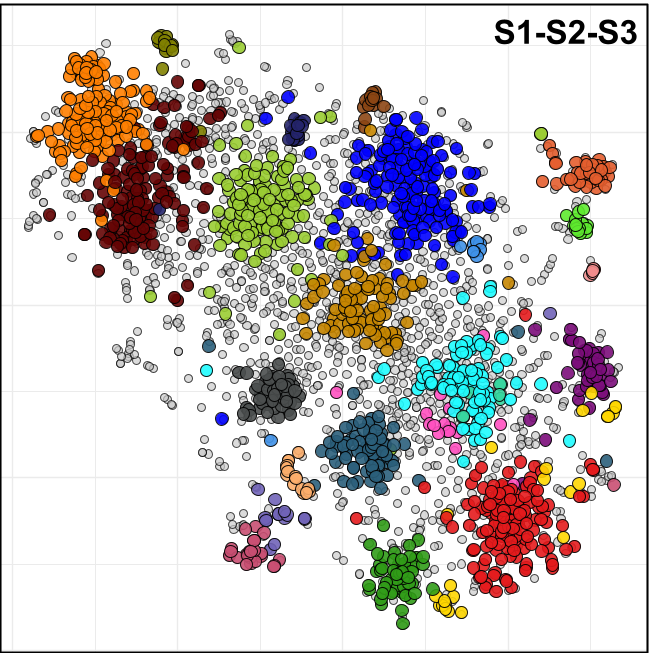 t-SNE 结果清晰地展示了 24 个细胞生态位,右侧条形图量化了不同阶段分配的蛋白数量。
深度思考与结论
这项研究的真正价值在于它回答了**“功能的空间边界”**问题。
- 脆弱的平衡:研究发现,虽然类似 Maurer's clefts 的区域突变率极高,但它们在体外培养(In vitro)中的生存适应分值(MFS)却较低,说明这些“前线区域”虽然多变,却是寄生虫与宿主角力的核心。
- 无序蛋白的妙用:导出路径上的蛋白质普遍具有较高的内在无序度 (Intrinsic Disorder),这可能是避开宿主抗体识别的一种策略,或者是为了方便在狭窄的转运通道中发生构象形变。
总结: 这篇 Nature Communications 论文不仅是一份静态的蛋白质名录,更是一部从空间维度解读疟原虫如何适应宿主环境的生存史诗。对于未来的疫苗开发和药物发现,这份地图提供了最精确的目标坐标。